蛋白酶体的生理病理学作用及靶向药物研发进展
来源
《中国新药杂志》 2025年 第34卷第19期
作者
左锐,周秋华,季晓君,苏进财,徐丹,吴舰
南京正大天晴制药有限公司
摘要
蛋白酶体广泛分布于细胞中,在绝大部分细胞生物学途径中发挥重要的调节功能以维持蛋白质稳态,分为组成型和免疫型。研究发现其功能异常与肿瘤、感染性疾病、神经退行性疾病、自身免疫性疾病的发生和进展密切相关。当前已上市药物主要为泛蛋白酶体抑制剂,另有部分免疫型蛋白酶体抑制剂在研。本文对蛋白酶体的结构和功能、生理病理学作用以及药物研发现状做一综述,为蛋白酶体的研究及靶向药物开发带来新的思考和启示。
关键词
蛋白酶体; 组成型; 免疫型; 泛素-蛋白酶体系统; 蛋白酶体与疾病; 靶向药物
| _ | 正文 | _ |
蛋白酶体存在于所有真核细胞、古细菌和一些细菌中,是一种多催化蛋白酶,由多种催化和调节蛋白组成的复合体。它具有3种不同的肽酶活性,包括胰蛋白酶样活性、糜蛋白酶样活性、半胱氨酸蛋白酶样活性,其活性受多种因素的调节,如磷酸化、泛素化等,在绝大部分细胞生物学途径中发挥许多重要的调节功能,维持细胞内的蛋白质稳态。
泛素-蛋白酶体系统(ubiquitin-proteasome system,UPS)是细胞内大多数蛋白的降解途径,由泛素化蛋白相关酶(泛素激活酶E1、泛素结合酶E2和泛素连接酶E3)和蛋白酶体两部分组成,参与细胞内80%以上蛋白质的降解,大多数蛋白在到达蛋白酶体之前被泛素化。在肾脏中,UPS发挥着红细胞生成素与葡萄糖转运调节、盐稳态调节、水平衡调节、确定肾小球细胞特征、足细胞蛋白调控等功能[1]。本文就蛋白酶体的作用机制、在疾病中的作用以及靶向蛋白酶体的药物研发进展进行综述。
1
蛋白酶体的结构与功能
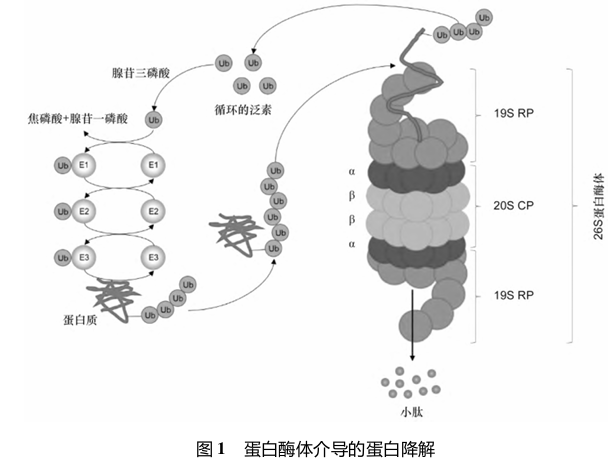
蛋白酶体具有维持蛋白质稳态、细胞周期调控、免疫调节、细胞凋亡、信号转导、线粒体、肿瘤发生、神经元等相关功能[4]。在细胞周期的精细调控中,蛋白酶体负责降解半衰期通常较短的周期调控蛋白(如B1,p21,p27),同时也调控肿瘤抑制蛋白p53,推动细胞周期的进展。大多数肿瘤细胞往往严重依赖蛋白酶体的活性,相比正常细胞对蛋白酶体抑制剂更为敏感。神经元由于其结构复杂、寿命长、无法细胞分裂等特点,因此维持其蛋白质稳态尤为重要,而蛋白酶体功能在神经退行性疾病中会减弱,因此其在阿尔茨海默病、帕金森病和亨廷顿病等多种神经退行性疾病治疗中的重要性已日益凸显。
蛋白酶体分为组成型和免疫型两大类[5]。组成型蛋白酶体在所有真核细胞中表达,活性催化亚基为β1,β2和β5,具有不同的裂解特异性。β2亚基在P1位点裂解具有碱性残基(Lys,Arg)的底物,被称为胰蛋白酶样。β5被称为胰凝乳蛋白酶样,因为它偏爱P1位点的疏水残基。β1亚基通常被称为类半胱天冬酶或具有肽酰谷氨酰水解活性。哺乳动物细胞中,编码蛋白酶体的基因受多种转录因子的调节,如STAT-3调节所有β亚基的表达。免疫型蛋白酶体主要在T细胞、B细胞、抗原呈递细胞等多种免疫细胞中表达,干扰素-γ(interferon-γ,IFN-γ)、Ⅰ型IFNs和肿瘤坏死因子-α(tumor necrosis factor-α,TNF-α)等促炎细胞因子或对LPS、应激条件的反应均可诱导免疫蛋白酶体的表达,3个催化亚基分别被免疫催化亚基β1i,β2i和β5i所代替。
文章内容由凡默谷小编查阅文献选取,排版与编辑为原创。如转载,请尊重劳动成果,注明【来源:凡默谷公众号】。
2
蛋白酶体与人类疾病
蛋白酶体在所有细胞中都是必不可少的,异常活性与多种疾病的发生发展相关联,主要有肿瘤、感染性疾病、神经退行性疾病(帕金森病)、自身免疫性疾病[系统性红斑狼疮(systemic lupus erythemato-sus,SLE)、狼疮肾炎(lupus nephritis,LN)]等[6-7]。
2.1 蛋白酶体与肿瘤
在肿瘤细胞中,核因子κB(nuclear factor kappa-B,NF-κB)是一个关键的转录因子,它参与了抗凋亡的IAP家族基因和Bcl-2生存基因的表达。而NF-κB的激活需要蛋白酶体介导的调控元件降解来激活转录,这一步骤对于NF-κB信号通路的激活至关重要,使得蛋白酶体成为癌症治疗的一个有效靶点。不同类型的癌症中都检测到26S蛋白酶体水平的升高以及蛋白酶体活性异常高,似乎高蛋白酶体活性对肿瘤细胞的存活很重要,它可能有助于保护细胞免受凋亡途径的影响,并清除细胞中受损的蛋白质[8]。蛋白酶体抑制已被证明在多种癌症中诱导细胞凋亡,肿瘤细胞比正常细胞对蛋白酶体抑制更敏感。蛋白酶体抑制剂抗肿瘤的分子机制主要包括增加肿瘤细胞的氧化应激和选择性诱导凋亡(肿瘤抑制因子p53水平增加、细胞周期调节因子p27增加、抗凋亡蛋白Bcl-2减少)[6]。研究表明,20S蛋白酶体对氧化应激的抵抗力非同一般,即使在高氧化应激条件下也能降解氧化损伤的蛋白质[9],这种适应性可使其成为抗肿瘤治疗的理想靶点。
免疫蛋白酶体可通过不同的且经常相互矛盾的机制促进或抑制肿瘤的发生。在结肠癌中,免疫蛋白酶体介导的NF-κB抑制蛋白(inhibitor of NF-κB,IκB)降解允许产生促炎信号,最终导致结肠上皮细胞的肿瘤转化; 在黑色素瘤中,IFN-γ的炎症刺激增加肿瘤抗原呈递和T细胞浸润,最终导致肿瘤细胞死亡; 在慢性髓系白血病(chronic myelogenous leukemia,CML)中,如果早期髓细胞在免疫蛋白酶体亚基基因中具有单核苷酸多态性(single nucleotide polymorphism,SNPs),则其对CML的易感性增加; 在卵巢癌细胞中,CpG岛(CpG island)的表观遗传修饰促进CD8+T细胞向肿瘤内迁移并诱导CTL介导的肿瘤杀伤; 在非小细胞肺癌中,上皮间质转化(ep-ithelial-mesenchymal transition,EMT)负责降低免疫蛋白酶体的表达,从而促进由于主要组织相容性复合体Ⅰ(major histocompatibility complex class I,MHC-Ⅰ)类抗原呈递缺失而导致的免疫逃逸[10]。
3种IFN-γ诱导亚基中的β5i已被证实与血液和实体恶性肿瘤关系最为密切,该亚基由PSMB8基因编码,在不同的癌症中具有广泛的表达,如非小细胞肺癌、肾细胞癌、胶质瘤、结肠癌、三阴乳腺癌(triple-negative breast cancer,TNBC)等[11-13],通常PSMB8基因的高表达与肿瘤的不良预后相关。研究显示,干扰PSMB8可通过减少细胞周期蛋白A/B1/D1、波形蛋白和N-黏连蛋白的表达,以及增加E-黏连蛋白的表达来抑制胶质瘤细胞的迁移和增殖。此外,干扰PSMB8可上调caspase-3的表达以诱导胶质瘤细胞凋亡。以上表明PSMB8与胶质瘤细胞的迁移、增殖和凋亡密切相关,可作为胶质瘤患者的一个新预后指标[13]。
2.2 蛋白酶体与感染性疾病
蛋白酶体与细菌或真菌感染之间的密切关系已被研究阐明。结核分枝杆菌(Mycobacterium tuberculosis,Mtb)是结核病的病原体,它在细菌病原体中罕见地表达功能性20S蛋白酶体。由于耐药菌株的出现加剧了结核病的流行,Mtb20S蛋白酶体备受关注,其已被用于探索结核病的治疗。已有如硼酸二肽类MLN-273、噁噻唑2-酮衍生物HT1171和GL5,N,C帽二肽DPLG2等几类不同的Mtb蛋白酶体抑制剂表现出不同程度的抗结核活性和选择性[14]。
2.3 蛋白酶体与神经退行性疾病
蛋白酶体在大脑可塑性过程中起重要作用,蛋白酶体相关蛋白至少占人脑蛋白质组的28%,其功能降低伴随着神经退行性病理的发展[15]。蛋白酶体亚基与已知在神经退行性疾病中积累的蛋白质相互作用,如帕金森病的α-突触核蛋白、阿尔茨海默病的tau蛋白和亨廷顿病的亨廷顿蛋白,以上都是最常见的神经退行性疾病[7]。帕金森病发病机制部分以黑质(substan-tia nigra,SNc)中多巴胺能神经元的变性为特征,错误折叠的α-突触核蛋白(alpha-synuclein,α-syn)在神经元内堆积是帕金森病的标志。阿尔茨海默病与调节蛋白酶体亚基的2种ATP酶Rpt1和Rpt6有关,Rpt1与tau有物理相互作用,在阿尔茨海默病患者的前额叶皮层、扣带回和顶叶皮层也发现Rpt6亚基显著减少,蛋白酶体活性降低。Rpt6同样被证明在蛋白酶体激活和减少突变型Htt基因聚集中是重要的,表明该亚基在亨廷顿病进展中的作用。研究表明,通过UPS(使用26S蛋白酶体激活剂或去泛素化酶抑制剂)或自噬作用降解泛素化蛋白质,有助于缓解或预防神经退行性疾病[16]。已有如T-006分子能够通过增加β5i基因的表达,选择性突变α-syn,并增强糜蛋白酶样蛋白酶体的活性,可作为一种蛋白酶体激活剂用于治疗帕金森病及相关疾病[17]。脑蛋白酶体的药理学调节似乎是通过与蛋白酶体相关的蛋白质(去泛素酶、PKA、CaMKIIα等)的组成和/或活性的变化来实现的,增加蛋白酶体活性将提供明显积极的疗效[15]。
2.4 蛋白酶体与自身免疫性疾病
免疫蛋白酶体源自组成型蛋白酶体,结构上的区别在于β亚基和调控复合物。在免疫蛋白酶体组装过程中,β1i(LMP2),β2i(MECL1,LMP10)和β5i(LMP7)亚基分别取代了β1,β2和β5,是一种变异的蛋白酶体。其在免疫细胞中大量表达,在抗原提呈中发挥重要作用,并参与调节细胞因子的产生、T细胞扩增和存活以及辅助T细胞的分化等大多数免疫过程[18]。此外,大多数非免疫细胞在细胞因子(尤其是IFN-γ)的作用下,都能诱导免疫蛋白酶体的表达。
免疫蛋白酶体的功能失调会导致各种免疫疾病,其上调可增加与自身免疫性疾病相关的细胞因子分泌[19]。由于抑制广泛分布的组成型蛋白酶体会产生毒性,需要减少剂量甚至停止治疗,因此开发免疫型蛋白酶体抑制剂用作治疗自身免疫性疾病是一种新的药物开发策略。
纵观蛋白酶体关联各种不同疾病的发生、进展、预后,蛋白酶体及其相关通路成了新药研发的重点关注靶点,并且在现有药物基础上取得了一些突破。
3
泛蛋白酶体抑制剂
当前靶向蛋白酶体的药物开发有几种策略,包括通过小分子抑制剂或激活剂直接调节蛋白酶体活性、利用蛋白酶体降解功能开发诱导特定病理蛋白降解的方法以及针对蛋白酶体的不同亚基开发选择性调节剂。
能够抑制26S蛋白酶体活性的化合物被称为蛋白酶体抑制剂,设计时主要考虑底物结合口袋、结构分析、药理特性等方面。目前,美国FDA已批准3款蛋白酶体抑制剂: 硼替佐米、伊沙佐米和卡非佐米,用于治疗多发性骨髓瘤和套细胞淋巴瘤,另有一些药物在研,主要是泛蛋白酶体抑制剂(见表1)。蛋白酶体抑制可诱导多种细胞反应,包括内质网应激、NF-κB抑制、细胞周期阻滞和促凋亡因子增加等,因此成为治疗各种疾病的重要靶点[14]。从化学分类来看,主要有肽醛、硼酸肽、环氧酶素和环氧酮、乳酸菌素和β-内酯、乙烯基砜等5种类别[4]。
3.1 硼替佐米
2003年,硼替佐米成为首个获得美国FDA批准上市的蛋白酶体抑制剂,是一种二肽硼酸衍生物,由美国强生公司和日本武田公司共同开发。临床使用静脉或皮下注射2种给药方式对抗肿瘤活性无差异[21]。在治疗剂量下,硼替佐米会抑制30%蛋白酶体介导的蛋白降解,足以诱导骨髓瘤细胞凋亡,而对非转化细胞不产生普遍毒性。但往往最初对硼替佐米有反应的患者易产生耐药性和复发,主要认为有2种机制[22-23]: 一种是蛋白酶体亚基的组成和表达发生了改变,另一种是β5亚基中硼替佐米结合口袋的突变。硼替佐米耐药的骨髓瘤细胞表现出抗凋亡蛋白的增加和促凋亡蛋白的减少[23-24],如较高表达水平的Bcl-2家族和热休克蛋白Hsp27,Hsp70,Hsp90,这些蛋白帮助减轻细胞中错误折叠蛋白质的负担[25]。根据药物说明书提示,使用硼替佐米可能会有周围神经病变、低血压、心脏疾病、肝脏/肺部功能异常、血小板减少等不良反应,应予以关注。
3.2 卡非佐米
卡非佐米是2012年获批的第2代不可逆蛋白酶体抑制剂,由美国奥尼克斯公司开发,是一种四肽环氧酮,同时作用于组成型和免疫型蛋白酶体,抑制β5催化位点的功能,通过抑制破骨细胞活性和刺激成骨细胞分化而具有骨合成代谢作用,疗效优于硼替佐米[26]。但对于曾使用过硼替佐米和/或对其产生耐药性的患者,卡非佐米活性较低,需考虑其他疗法或联合用药。该药既可以单独使用,也可联合其他抗骨髓瘤药物使用。由于卡非佐米对蛋白酶体活性的不可逆抑制,可能对肾小球细胞(尤其是内皮细胞)产生直接的细胞毒性[1]。药物说明书也提示,卡非佐米可能会产生心脏毒性、肺毒性、呼吸困难、高血压、急性肾衰等不良反应。
3.3 伊沙佐米
伊沙佐米是一种以可逆方式靶向组成型蛋白酶体亚基的口服蛋白酶体抑制剂,于2015年获得美国FDA批准,是硼替佐米的口服生物利用类似物,优先结合并抑制20S蛋白酶体的糜蛋白酶样活性(β5和LMP7),而对半胱氨酸蛋白酶样活性和胰蛋白酶样活性的抑制分别降低10倍和1000倍[27]。临床试验报告显示,患者使用伊沙佐米治疗的外周神经病变发生率较硼替佐米低,且对硼替佐米耐药的患者治疗有效[28]。临床前模型中,伊沙佐米对实体瘤也展现出抗肿瘤药效,目前有数个Ⅰ期或Ⅱ期临床试验在评估其对胶质母细胞瘤、TNBC、B细胞淋巴瘤、转移性膀胱癌等的疗效。
3.4 奥普佐米
3.5 marizomib
marizomib是第2代不可逆的透脑性泛蛋白酶体抑制剂,对蛋白酶体β5,β1和β2亚基的半数抑制浓度(half maximal inhibitory con-centration,IC50)分别为3.5,28,430nmol·L-1,剂量依赖性降低胶质瘤细胞U-251和D-54的存活率,IC50分别为52和20nmol·L-1[30]。临床前小鼠体内药效显示,marizomib能够显著抑制人多发性骨髓瘤异种移植瘤的生长且未表现出明显毒性[31]。在治疗中枢神经系统多发性骨髓瘤方面,marizomib因其良好的中枢神经渗透性而具有优势[32]。marizomib是TNBC中蛋白酶体和氧化磷酸化(oxidative phos-phorylation,OXPHOS)的双重抑制剂,通过减少循环肿瘤细胞的数量和参与上皮间质转化的基因表达来减少肺和脑转移,且其诱导的OXPHOS抑制会上调糖酵解以满足TNBC细胞的能量需求,因此糖酵解抑制联合marizomib使用会产生协同抗癌活性[33]。但最新一项Ⅲ期临床研究表明[34],基于替莫唑胺的标准化疗中加入marizomib会导致更多毒性,未改善新诊断胶质母细胞瘤患者的总生存期(overall survival,OS)(17.0个月vs16.5个月)或无进展生存期(pro- gression-free survival,PFS)(6.0个月vs6.3个月)。
4
选择性蛋白酶体抑制剂
由于非选择性蛋白酶体抑制剂对2种蛋白酶体多个活性位点无差别的抑制,导致在临床应用中存在诸多严重不良反应,因此开发选择性蛋白酶体抑制剂显得尤为重要和急迫。免疫蛋白酶体抑制剂可以在不影响普遍表达的蛋白酶体的情况下靶向活化的免疫细胞,从而避免基于机制的毒性,但需要更多研究来确定免疫蛋白酶体在调节各种免疫介导疾病中不同免疫细胞亚群的功能、分化和存活方面的作用[19]。近年来,组成型和免疫型蛋白酶体的结构差异已被解析,选择性免疫蛋白酶体抑制剂的研发也取得了一些进展和突破(见表2),有望早日为临床患者带来福音。
4.1 KZR-616(zetomipzomib)
KZR-616(zeto-mipzomib)是首创的选择性免疫型蛋白酶体抑制剂,属于三肽环氧酮类衍生物,由Kezar Life Sciences公司开发,选择性作用于免疫蛋白酶体亚型LMP7和LMP2,IC50分别为39和131nmol·L-1[36]。在PBMC细胞中,KZR-616可阻断炎症细胞因子的产生,包括TNF-a,GM-CSF,IL-6和IL-23[37]。在淋巴细胞中,KZR-616可导致Th1和Th17极化降低,活化的B细胞向浆细胞的分化减少,但会增加调节性T细胞的分化[38]。同时,在多种自身免疫性疾病中具有广泛的治疗潜力。Muchamuel等[39]使用LN的NZB/W F1小鼠模型研究发现,KZR-616主要通过影响多个免疫效应细胞信号通路、浆细胞分化、线粒体和代谢功能障碍以及肾小球损伤相关基因表达,驱动NZB/W F1小鼠的蛋白尿消退且在停药后至少维持了8周,并显著减少了自身抗体的产生和肾脏IgG沉积; 与吗替麦考酚酯(mycophenolate mofetil,MMF)联合使用进一步改善了NZB/W F1小鼠的肾脏病变,表现出协同作用; 同时在人类白细胞中也观察到了类似的基因变化,表明KZR-616可能通过广泛的免疫调节反应在LN和其他自身免疫性疾病中发挥治疗作用。
4.2 M3258
5
未来展望
尽管蛋白酶体抑制剂在治疗多发性骨髓瘤等血液系统肿瘤的临床中取得了较好的结果,但对如TNBC、前列腺癌、肺癌等实体瘤尚未显示出相同的疗效。在一项研究中,共同抑制β5i和β2i亚基可诱导实体瘤细胞死亡,但蛋白酶体抑制剂的瘤内浓度未达要求,因此实体瘤缺乏反应的原因可能是效力不足或肿瘤穿透力差[10]。
SLE和LN是多系统疾病,已被证明与蛋白酶体相关联,获批用于SLE/LN的药物很少,目前尚无治愈的方法,具有显著的未满足临床需求。标准治疗对SLE/LN有严重的不良事件,例如糖皮质激素和免疫抑制剂易产生继发感染、骨髓抑制、肝损伤等,尽管患者接受了最大化的标准治疗,但可能仍在经历难治性疾病。
当前,靶向蛋白酶体的药物主要为注射剂型,在临床给药过程中会出现一些注射部位反应(injection site reaction,ISR)如不适、红斑、硬化、疼痛/压痛等,虽较轻微但给患者带来明显不适。皮下注射药物的疼痛可能与药物本身,注射针头、部位、体积、黏度,注射剂pH和缓冲液组成,以及所使用的防腐剂类型相关[43]。研究表明,硼替佐米皮下注射导致ISRs的原因很大可能与药物导致的免疫反应相关,而腹部注射出现严重ISRs的可能性更低且可逐渐耐受[44]。从已公布数据来看,zetomipzomib的ISRs主要来源于药物本身导致的免疫反应,发生率与硼替佐米相差不大,主要为自限性轻、中度反应。由此可启发更安全的药物研发方向,或可考虑开发口服剂型,以带来更好的患者依从性。
6
小结
蛋白酶体靶向药物研发是一个挑战和机遇并存的方向,随着对该靶点功能的深入了解和透彻的机制研究,有望针对实体瘤或自身免疫性疾病等开发出更高效、安全、选择性优异的蛋白酶体调节药物,为不同类型疾病提供新的治疗选择和解决方案,尽快覆盖广大未满足临床需求。
参考文献
详见《中国新药杂志》 2025年 第34卷第19期
免责声明返回搜狐,查看更多